Může být zpomalení transportu tuků do buněk řešením obesity?
Už delší dobu se prolíná mými příspěvky myšlenka, že právě zpomalení některých konkrétních procesů by mohlo být řešením metabolických problémů a mohlo by zvýšit rychlost metabolizmu celkově. Vede mě k tomu řada indicií. Pokud je hlavním problémem přebytek aldehydu HNE vzniklého po uvolnění linolové kyseliny z kardiolipinu oxidačním stresem enzymem iPLA2γ, pak je řešením snížení oxidačního stresu, prostě omezení procesů, které oxidační stres vyvolávají.
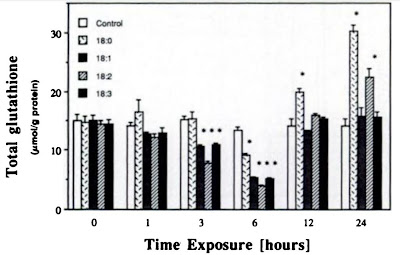
Právě spalování tuků za nevhodných podmínek by mohlo tímto procesem být. Na využívání uložených tuků k získávání energie není vůbec nic špatného, ale za určitých podmínek dochází k přetížení systému, což generuje oxidační stres. Stačí k tomu například celkový nedostatek kyslíku, nedostatek redukovaného glutathionu GSH, nedostatek molekul NADPH pro recyklaci zoxidovaného glutathionu GSSG, nedostatečná funkce enzymu ALDH2, který odstraňuje vzniklé aldehydy, nebo prostě jen přebytek volných mastných kyselin. Všechny tyto problémy mají za následek oxidační stres a zvyšování produktů peroxidace polynenasycených mastných kyselin, z nich asi nejproblematičtější je právě 4-hydroxy-2-nonenal (HNE).
Jak tedy lze omezit spalování tuků v případě, že se vyskytne dočasný nedostatek nějakého důležitého kofaktoru? Jsou na to v buňce nějaké regulační mechanizmy?
Jeden mechanizmus už jsem zmínil, je to přeměna HNE na HNA enzymem ALDH2, tedy vyvolání tzv. uncouplingu (mitochondriálního odpojení) tedy řízené maření energie na teplo. Tento mechanizmus je asi poměrně zásadní, a když přestane fungovat musí určitě existovat nějaké záložní systémy, ale jaké?
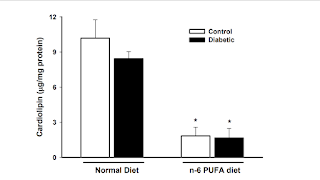
No řekl bych, že to vede ke snížení obsahu kardiolipinu v mitochondriích, což vede ke snížení rychlosti získávání energie oxidativní fosforylací, tedy méně spalování tuků i glukózy, a nastupuje fermentace glukózy bez spotřeby kyslíku. To sníží oxidační stres. Ale tuky nejdou bez kyslíku zpracovat na CO2 a vodu, lze je pouze uložit. Pokud by nebyla k dispozici glukóza, není jak získat energii.
Naštěstí zase existuje záchranný mechanizmus, při nedostatku glukózy se spustí glukoneogeneze, která spotřebovává molekuly vzniklé rozkladem triglyceridů a mastných kyselin pomocí beta-oxidace, tuky tak lze přetransformovat i bez kyslíku. Předpokládám, že tyto záchranné anaerobní procesy probíhají pouze lokálně a nelze je provádět v celém organizmu.
Právě lokální snížení oxidačního stresu přechodem na fermentaci je v případě nějakého nedostatku nesmírně důležité. V celém organizmu je obvykle dostatek buněk, které mohou zpracovat produkty anaerobního metabolizmu, vzniká např. laktát, acetát nebo beta-hydroxybutyrát. Tyto molekuly není problém zpracovat na energii někde jinde.
 |
| Léky proti obezitě potlačují transportní protein CD36 |
Nebylo by ale lepší těmto anaerobním mechanizmům předcházet?
Šlo by nějak snížit rychlost spalování tuků? Třeba zpomalením jejich vstupu do buňky přemístěním transportních proteinů CD36 z membrány do cytosolu?

Nedávno vyšla studie která krásně ukazuje, že moderní léky proti obezitě semaglutide a tirzepatide, agonisté GLP-1 receptorů, značně potlačují aktivitu proteinů CD36 pro transport tuků do jaterních buněk u myší. To mne vedlo ke zkoumání, jak vlastně funguje transport dlouhých mastných kyselin pomocí proteinů CD36. Už dříve jsem totiž našel studii, která ukazovala pozitivní efekt potlačení aktivity CD36 u buněk cévního endotelu pomocí dlouhých polynenasycených mastných kyselin DHA a EPA z rybího tuku.
Snížení množství proteinů CD36 na vnější straně buněčné membrány se tedy jeví jako dobrá metoda boje proti metabolickým problémům, hlavně u buněk, které tuky nemají ukládat, např. u jaterních a cévních buněk. Proč? Platí to obecně? Zdá se, že tyto buňky by vůbec transportní proteiny CD36 na povrchu neměly mít, ale přesto je při velmi tučné stravě mají. Může za to nadbytek volných mastných kyselin v krvi? A kterých mastných kyselin? Nebo to způsobují triglyceridy z VLDL nebo chylomikronů? Nebo to způsobují oxidované částice LDL, peroxidované tuky?
 |
| Rybí tuk (EPA, DHA) potlačuje vliv inzulinu na transportní protein CD36 |
Co je vlastně protein CD36 a jak funguje?
Začal jsem pátrat nejprve pomocí AI a pak čtením studií, je to zatím poměrně málo prozkoumaná oblast. Je to asi velmi složitý výzkum a výstupy z něho nejsou moc přímočaré. Na první pohled by se mohlo zdát, že je to snadné, že mastná kyselina se na povrchu buňky přichytí k vyčnívajícímu proteinu CD36 a ten ji vtáhne do buňky. Jednoduchý proces, ale je to mnohem, mnohem složitější. Ale i když transportní proteiny CD36 zcela odstraníte, mastné kyseliny se do buňky přesto v dostanou, jen v menším množství. Existují i jiné mechanizmy vstupu.

Množství transportních proteinů CD36 na povrchu je silně závislé na inzulinu. Celý proces je značně dynamický, molekuly CD36 se zachycenou mastnou kyselinou jsou ovládány dalšími enzymy. A je překvapivé, že CD36 neputují kamkoli, ale přenášejí tuky pouze k tukovým kapičkám, kde proběhne esterifikace na triglyceridy a uložení do kapičky. Pokud nemohou mastnou kyselinu předat dál, jsou molekuly CD36 blokovány a nemohou jít zpět na povrch a zachycovat další tukové molekuly. To je přímá souvislost s regulací inzulinem, který ovládá esterifikaci a ukládání tuků. Pokud se esterifikace podpoří inzulinem, zvýší se rychlost návratu CD36 k povrchu buňky a rychlost vstupu tuků do buňky se velmi zvýší.
Navíc se v tomto procesu používá mechanizmus palmitoylace, tedy přichycení a uvolnění palmitové kyseliny na přesně definovaných místech enzymu. Palmitoylace je důležitá pro stabilizaci polohy CD36 na buněčné membráně. Pro vstup dlouhých mastných kyselin se tedy musí neustále enzymaticky přichytávat a uvolňovat na správných místech saturovaná kyselina palmitová vzniklá de novo lipogenezí. Pokud by chyběla, omezilo by to aktivitu CD36 v tukových buňkách, což by zpomalilo ukládání tuků. Mohlo by to i zvýšit aktivitu AMPK v jaterních buňkách a obnovit rychlejší metabolizmus, kdo ví. Naopak mohl by přebytek palmitové kyseliny z de novo lipogeneze v játrech vést k nežádoucímu přemístění CD36 k povrchu buňky? Mohl by být tento přebytek, spolu s vysokou aktivitou proteinů CD36, způsoben aktivací polyolové dráhy v cévním endotelu nebo v jaterních buňkách, tedy endogenní produkcí fruktózy?

Pomocí CD36 se transportují tuky hlavně do buněčného meziskladu, tukových kapiček, nejsou hned použitelné ke spalování. Přitom proběhne optimalizace složení. Tuky pro spalování se pravděpodobně uvolňují až z tukových kapiček, transportní proteiny CD36 tedy pomáhají stabilizovat poměr mezi saturovanými a nenasycenými tuky. Celý proces transportu přes CD36 je řízen několika enzymy, vypnutí každého z nich potlačuje transport tuků do buňky, zhoršuje ukládání tuků v adipocytech a přitom aktivuje uvolňování tuků z tukových kapiček a jejich spalování, aktivuje AMPK. Vypnutí CD36-/- zabránilo ukládání tuků v adipocytech a vzniku obezity, aktivovalo enzym AMPK, potlačilo tvorbou nových tuků, ale tuk se stejně ukládal v játrech. Játra používají zřejmě jiný mechanizmus pro vstup tuků do buňky a asi k tomu nepotřebují CD36.
 |
| Bafetinib a entospletinib jsou inhibitory endocytózy mastných kyselin zprostředkované proteinem CD36. Cd36-/- je genetické vypnutí transportního proteinu CD36. |
Běžné hladiny volných mastných kyselin aktivují prostřednictvím CD36 kinázu AMPK tím, že se CD36 spolu s mastnou kyselinou oddělí od membrány a spojí se s LKB1 uvolněným z jádra. To fosforyluje AMPK a aktivuje spalování tuků. Odstranění CD36 také aktivuje AMPK. Přítomnost CD36 na povrchu zřejmě blokuje aktivitu AMPK. K aktivaci musí proběhnout de-palmitoylace a uvolnění z membrány (ten obrázek je trochu zavádějící).

Ovšem pokud není dostatečně rychle odstraňován aldehyd HNE, který při oxidaci tuků vznikne (zejména při nedostatečné funkci enzymu ALDH2), přilepí se HNE k LKB1 a celý tento komplex přestane fungovat, AMPK se neaktivuje a preferuje se tvorba triglyceridů a jejich ukládání. Vyšší aktivita CD36 pak aktivuje ukládání tuků.

Takže příliš mnoho tuku nebo peroxidované tuky sice aktivují CD36, ale potlačí aktivitu AMPK. Molekuly mastných kyselin se zachytí, ale předávají se pouze tukovým kapličkám. Musí se zformovat vhodné triglyceridy, musí být k dispozici jiné mastné kyseliny aby složení triglyceridů bylo vhodné pro ukládání. Tam vidím potenciální problém, který zpomaluje zpracování tuků.
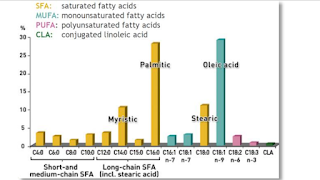
V případě tučné stravy tedy široké spektrum volných mastných kyselin asi značně usnadní transport, převaha jedné konkrétní mastné kyseliny ve stravě pak transport tuků musí zpomalit, nejde z ní tak snadno vytvořit triglycerid. Musí být zachován poměr mezi nasycenými a nenasycenými tuky, cca 3:7. V tukové tkáni může být rychlé ukládání velmi žádoucí, ale jinde ne.
 |
| Bafetinib a entospletinib jsou inhibitory endocytózy mastných kyselin zprostředkované proteinem CD36. Cd36-/- je genetické vypnutí transportního proteinu CD36. |
Omezení transportu přes CD36 přebytkem nějaké konkrétní mastné kyseliny, a zároveň přemístění CD36 z membrány do cytosolu může vést k aktivaci spotřeby tuků z tukových kapiček. Myslím, že toto by mohl být jeden z hlavních mechanizmů účinku rybího tuku, EPA a DHA. Pozitivně se projevuje hlavně u buněk jiných než tukových. Například v játrech způsobí, že se přebytečné tuky neukládají, ale spotřebovávají. Složení dietních tuků tak může přímo ovlivňovat rychlost ukládání v tukové tkáni a naopak nevhodné složení asi uvolňuje nepoužité mastné kyseliny do krevního oběhu a čeká na jejich zpracování jaterními buňkami.
Jsou to játra, která jsou vystavena přebytečným tukům, které tělo nevyužilo nebo neuložilo. To vidíme na příkladu myší s vypnutým transportním proteinem CD36-/-. Mají tučnější játra. Nepoužitelné mastné kyseliny musejí být v játrech přebudovány, musí se rozsekat a zase složit na mastné kyseliny použitelné do triglyceridů. S tímto může pomoci přítomnost krátkých a středně dlouhých tuků (MCT), které nejsou vhodné pro uložení do triglyceridů a pomáhají aktivovat transformační procesy, což už jsem zde doporučoval mnohokrát.
Následující
Zdroje:
CD36 facilitates fatty acid uptake by dynamic palmitoylation-regulated endocytosis
Regulation of AMPK Activation by CD36 Links Fatty Acid Uptake to β-Oxidation
Komentáře
Okomentovat